lunes, 28 de mayo de 2012

8.4.2 OPERON TRIPTOFANO

El Operón Triptófano regula la transcripción de las enzimas que intervienen en una vía anabólica. Las cinco enzimas que regula este Operón pertenecen a la vía anabólica del aminoácido Triptófano.

Es más que innecesaria la síntesis de un aminoácido, por parte de la célula, cuando la misma contiene cantidades suficientes de él. Cuando la concentración de Triptófano es la adecuada el represor inactivo, codificado por el gen regulador, se une a otra molécula que le confiere la capacidad para acoplarse al operador. Al estar el operador ocupado, la ARN polimerasa no podrá formar el Complejo Promotor Abierto, por lo tanto, la síntesis de las enzimas intervinientes en la vía anabólica del Triptófano no son producidas. El co-represor, molécula que confiere la activación del represor, es nada más ni nada menos que el Triptófano.

 Es sumamente lógico que lo sea, ya que cuando hay una alta concentración de Triptófano, no es necesario gastar energía en sintetizarlo. Si la concentración de mencionado aminoácido es baja, el represor no podrá unirse al co-represor, por tal motivo el represor no adquirirá la capacidad de unirse al operador.

Al encontrarse el operador libre, la ARN polimerasa podrá iniciar la transcripción de los genes estructurales, obteniéndose las enzimas necesarias para poder sintetizar este aminoácido esencial.


8.2.1 OPERON LACTOSA


Un Operón es grupo de genes estructurales cuya expresión está regulada por los mismos elementos de control (promotor y operador) y genes reguladores.


Los principales elementos que constituyen un operón son los siguientes:Los genes estructurales: llevan información para polipéptidos. Se trata de los genes cuya expresión está regulada. Los operones bacterianos suelen contener varios genes estructurales, son poligénicos o policistrónicos. Hay algunos operones bacterianos que tienen un solo gene estructural. Los operones eucarióticos suelen contener un sólo gen estructural siendo monocistrónicos.

El promotor (P): se trata de un elemento de control que es una región del ADN con una secuencia que es reconocida por la ARN polimerasa para comenzar la transcripción. Se encuentra inmediatamente antes de los genes estructurales. Abreviadamente se le designa por la letra P.

El operador (O): se trata de otro elemento de control que es una región del ADN con una secuencia que es reconocida por la proteína reguladora. El operador se sitúa entre la región promotora y los genes estructurales. Abreviadamente se le designa por la letra O.

El gen regulador (i): secuencia de ADN que codifica para la proteína reguladora que reconoce la secuencia de la región del operador. El gen regulador está cerca de los genes estructurales del operón pero no está inmediatamente al lado. Abreviadamente se le denomina gen i.

Proteína reguladora: proteína codificada por el gen regulador. Está proteína se une a la región del operador.

Inductor: sustrato o compuesto cuya presencia induce la expresión de los genes.


 En ausencia del inductor (la lactosa), la proteína represora producto del gen i se encuentra unida a la región operadora e impide la unión de la ARN-polimerasa a la región promotora y, como consecuencia, no se transcriben los genes estructurales
En presencia del inductor (la lactosa), este se une a la proteína reguladora que cambia su conformación y se suelta de la región operadora dejando acceso libre a la ARN-polimerasa para que se una a la región promotora y se transcriban los genes estructurales. Por consiguiente, la presencia del inductor hace que se expresen los genes estructurales del operón, necesarios para metabolizar la lactosa    


8.2 REGULACION DE LA TRANSCRIPCION EN ORGANISMOS PROCARIOTICOS

http://www.ucm.es/info/genetica/grupod/Operon/Operon.htm

En las bacterias, a pesar de ser organismos unicelulares, también es necesario regular la expresión de los genes adaptándola a las necesidades ambientales. Es un principio de economía celular el que la expresión de los genes este regulada según las circunstancias celulares. Un buen ejemplo de esta situación en bacterias es la regulación de las enzimas implicadas en el metabolismo de los azúcares. Las bacterias pueden emplear para obtener energía distintas fuentes de carbono, como la glucosa, lactosa, galactosa, maltosa, ramnosa y xilosa. Existen enzimas capaces de introducir cada uno de estos azúcares en la bacteria y enzimas capaces de romperlos para obtener energía. Lógicamente, sería un despilfarro energético producir simultáneamente todos los enzimas necesarios para metabolizar los diferentes azúcares mencionados.


 Por consiguiente, sería mucho más económico para la célula producir solamente las enzimas necesarias en cada momento, es decir, si en el medio en el que vive la bacteria la principal fuente de carbono es la lactosa, solamente se expresarían los genes necesarios para metabolizar la lactosa, mientras que los otros genes no se expresarían. Por tanto, es esencial que exista un mecanismo de regulación de la expresión génica, de manera que los genes se expresen cuando sea necesario.


La regulación de la producción de proteínas (síntesis de proteínas) considerando el proceso en su conjunto, puede llevarse a cabo en tres niveles:
·         Replicación
·         Transcripción
·         Traducción.
De los tres niveles de regulación, uno de los mejor conocidos actualmente es la regulación durante la transcripción.


8.1 NIVELES DE REGULACION DE LA EXPRESION GENETICA


El control de los genes regulables se realiza mediante proteínas que van a desarrollar un control activador o inhibidor sobre el mecanismo de la transcripción. Las células contienen un conjunto de proteínas que al unirse a secuencias específicas del ADN activan o desactivan los genes. Cada una de estas proteínas reguladoras de genes se encuentra en un número pequeño de copias y reconoce una secuencia de ocho a quince nucleótidos de la cadena del ADN. La unión puede facilitar (regulación positiva) o inhibir (regulación negativa) la transcripción de un gen adyacente.
En el caso de células procariotas, la mayoría de los ARNm son policistrónicos y pueden llevar transcritos de 2 a 6 genes. Los genes regulables que codifican proteínas de una ruta metabólica concreta no se encuentran dispersos en el genoma, sino que están normalmente adyacentes, agrupados en unidades de funcionamiento u operación denominadas operones, y su transcripción está bajo el control de proteínas activadoras y represoras. La región del ADN donde se unen estas proteínas recibe el nombre de operador y está muy próxima, si no solapada, con la región del promotor.

El ADN de Escherichia coli consta de un único cromosoma circular que contiene información para unas 4000 proteínas distintas; sin embargo, en un momento dado sólo se sintetizan algunas de ellas. Al ser un organismo procariota, regula la expresión de muchos de sus genes en función de los niveles intracelulares de metabolitos específicos, que varían según el medio ambiente que rodea a la célula. Los estudios genéticos sobre la utilización de lactosa como fuente alimenticia permitieron describir un modelo de regulación de expresión génica, el operón lactosa (lac), que es uno de los ejemplos mejor caracterizados de regulación a nivel de la transcripción.


Control positivo: Se dice que un sistema está bajo control positivo cuando el producto del gen regulador activa la expresión de los genes, actúa como un activador.
Control negativo: se dice que un sistema está bajo control negativo cuando el producto del gen regulador reprime o impide la expresión de los genes, actúa como un represor.


INTRODUCCION

REGULACION DE LA EXPRESION GENETICA


Los organismos multicelulares complejos están compuestos de diferentes tejidos cuyas características individuales dependen de las proteínas específicas expresadas por sus tipos celulares. La diferenciación,  el desarrollo y la funcionalidad  de los tejidos específicos dependen  del conjunto de proteínas selectivamente expresadas por cada célula. Estas proteínas expresadas en forma diferencial pueden  funcionar como componentes estructurales de las células, enzimas reguladoras del metabolismo, factores de transcripción,  receptores celulares, componentes intracelulares de señalización, etc.

La expresión incorrecta de tales proteínas, su expresión en lugares equivocados, a destiempo, o la producción en cantidades anormales de proteínas específicas o de proteínas de función anómala subyace a toda patología celular de base genética.
Por consiguiente el conocimiento de los mecanismos de regulación de la expresión proteica en eucariontes  contribuirá al conocimiento de las bases moleculares de diversas patologías.
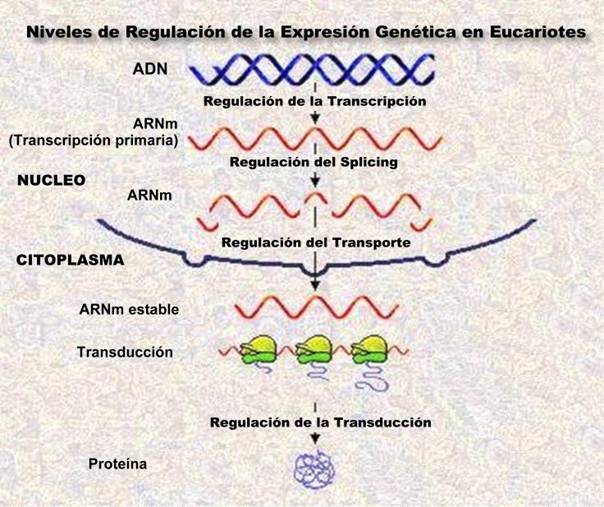
NIVELES DE REGULACION DE LA EXPRESION PROTEICA EN EUCARIONTES

En las células eucariotas, la capacidad de expresar proteínas biológicamente activas resulta de  diferentes niveles  regulatorios.
La compactación de la cromatina afecta la capacidad de unión de las enzimas y factores transcripcionales de genes específicos. La cromatina se puede dividir en dos clases según su patrón de tinción. La eucromatina se tiñe suavemente y se corresponde con regiones  del genoma que están disponibles  para la transcripción. Por otro lado,  la heterocromatina, se tiñe intensamente  y se corresponde a regiones del genoma que  están densamente compactadas e inaccesibles para el aparato transcripcional.
Se pueden distinguir dos clases de heterocromatina: la constitutiva y la facultativa. La constitutiva hace referencia a cromosomas o parte de ellos que son heterocromáticos en todas las células de una misma especie, mientras que la facultativa implica zonas de cromosomas que se pueden descompactar tornándose en  eucromatina  en algunas células de un mismo organismo.
Como la heterocromatina no puede ser transcripta, la expresión génica en los eucariontes se puede reprimir  por condensación de eucromatina en heterocromatina. Todavía no se conocen todos los factores que  modulan la descompactación de la cromatina. Ciertamente hay proteínas que reconocen secuencias específicas del DNA y una vez unidas, transmiten la señal  de descondensación de  cerca de 10000 pares de bases correspondientes a un bucle de la cromatina.

Las acetilaciones y desacetilaciones de histonas son modificaciones covalentes frecuentes en estos fenómenos de descompactación cromatínica. Un ejemplo típico de este tipo de regulación ocurre  en  la acetilación de coactivadores involucrados en las transcripciones genéticas moduladas por las hormonas tiroideas. Las acetilaciones se producen en los residuos de lisina de los extremos aminoterminales de las histonas, reduciendo su carga positiva y por lo tanto su afinidad de unión al ADN cargado negativamente. La desacetilación de las histonas, mediada por desacetilasas provoca el efecto contrario (recompactación).

Secuencias características de organización del DNA como los  palíndromes así como la disposición espacial del  DNA Z han sido relacionados con señalizaciones para el sitio de inicio de la transcripción.


OBJETIVOS

Integrar los conocimientos anteriores con los mecanismos de regulación genética para entender a nivel molecular los procesos metabólicos.

PORTADA


         INSTITUTO TECNOLOGICA DE CD      ALTAMIRANO


BIOLOGIA MOLECULAR

 
UNIDAD VIII

 
ALUMNO:
MIGUEL ANGEL ARZATE TORRES

 
MAESTRO:
FRANCISCO JAVIER PUCHE ACOSTA 


CD ALTAMIRANO GRO, MAYO DEL 2012